生命の精密機械「タンパク質の構造」決定の謎とAI新時代の全貌
筋肉や皮膚の形成から、体内の化学反応を司る酵素、免疫を担う抗体に至るまで、私たちの生命現象の主役となっているのがタンパク質です。炭水化物や脂質と異なり、タンパク質が驚くほど多様で高度な機能を果たせる秘密は、その特異な「かたち」、すなわち立体構造の精密さに隠されています。
わずか20種類のアミノ酸が特定の順序で連結し、自発的に折りたたまれることで唯一無二の機能を発揮するこのメカニズムは、長年「生命最大の神秘」と呼ばれてきました。生化学の基礎概念である一次構造から四次構造の階層的ネットワーク、熱やpHによる変性の本質、そして2026年現在劇的な進化を遂げているAI創薬の最前線まで、構造生物学の根幹を解き明かします。
📌 【この記事の重要ポイントまとめ】
- 要点1:タンパク質の機能は「アミノ酸配列(一次構造)」が規定する独自の3次元フォールディングによって完全に決定される。
- 要点2:熱やpH変化による変性は、共有結合以外の「水素結合や疎水性相互作用」が崩壊し、機能的な立体構造が不可逆的に失われる現象である。
- 要点3:AI構造予測技術の飛躍により、複合体や動的変化の予測が可能となり、2026年の分子標的薬・バイオマテリアル開発は新次元へ突入している。
【階層で読み解く】一次構造から四次構造までの違いと結合の全容
タンパク質の立体構造は、単純な紐状の分子が段階的に組み合わさる4段階の階層構造によって成り立っています。この階層性を正しく理解することが、タンパク質 機能 決定要因を紐解く第一歩となります。
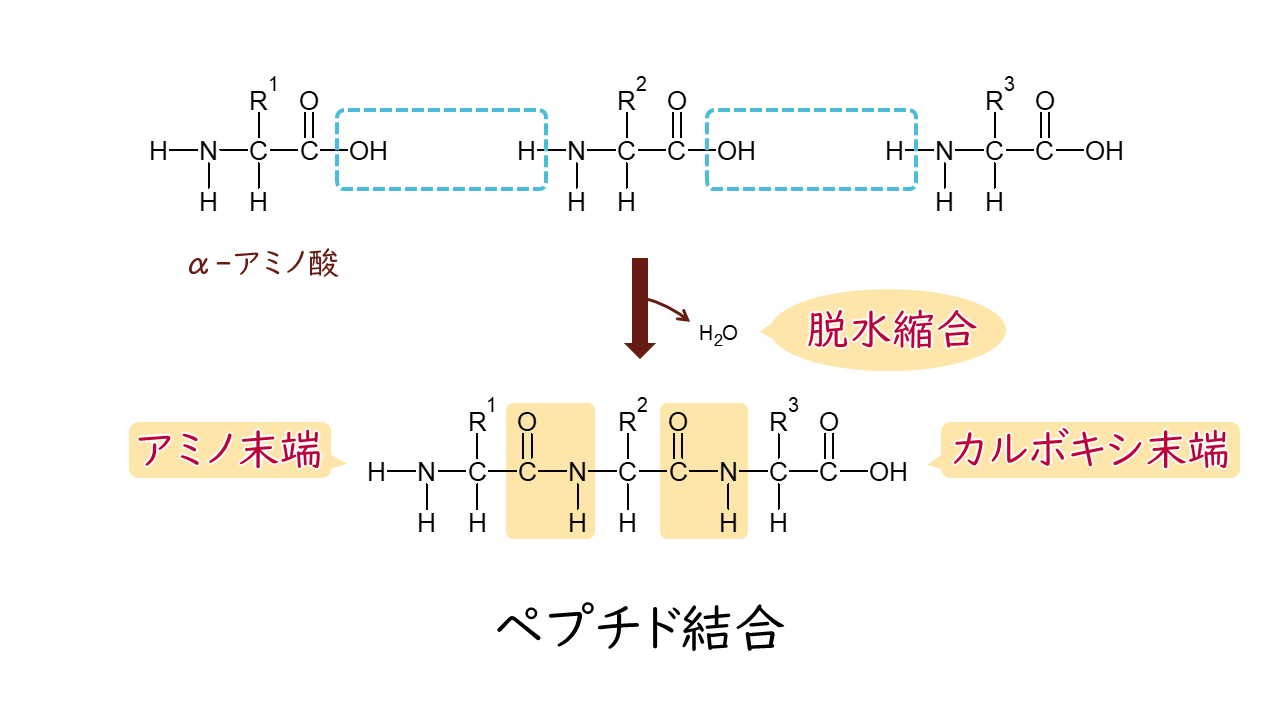
すべての出発点となるのが、DNAの遺伝情報通りにアミノ酸が一列に連結した一次構造です。アミノ酸同士は、一方のアミノ基(-NH₂)ともう一方のカルボキシ基(-COOH)から水分子が1つ脱離して強固に結ばれるペプチド結合によって鎖状(ポリペプチド)を形成します。このペプチド結合 アミノ酸配列の並び順こそが、以後のすべての立体配置を決定づける設計図となります。
続いて現れるのが二次構造です。ポリペプチド主鎖の骨格部分にある「-C=O」と「-N-H」の間で規則的に水素結合が架橋されることで、らせん状に巻いたアルファヘリックス(αヘリックス)や、シート状に並んだベータシート(βシート)と呼ばれる局所的な規則的構造が自発的に構築されます。
さらに、これらの二次構造がアミノ酸の側鎖(R基)同士の相互作用によって複雑に折りたたまれたものが三次構造です。疎水性アミノ酸が内側に集まる疎水性相互作用、正負の電荷によるイオン結合、そしてシステイン残基同士が強固に結びつくジスルフィド結合(S-S結合)などにより、1本のポリペプチド鎖が機能的な立体単位として完成します。
最後に、複数の三次構造を持ったポリペプチド鎖がサブユニットとして集まり、巨大な分子機械として機能する形態を四次構造と呼びます。例えば、血液中で酸素を運ぶヘモグロビンは、4つのサブユニットが組み合わさったサブユニット 複合体として機能します。
| 構造階層 | 形成を担う主な化学結合・相互作用 | 代表的な構造・生体内具体例 | 機能発現における役割と位置づけ |
|---|---|---|---|
| 一次構造 | 強固な共有結合(ペプチド結合) | アミノ酸配列そのもの(インスリンなど) | 立体構造を決定づける遺伝情報の直接的翻訳 |
| 二次構造 | 主鎖間の規則的な水素結合 | αヘリックス、βシート | 局所的な骨格形成(コラーゲンやケラチン) |
| 三次構造 | 疎水性相互作用、水素結合、イオン結合、ジスルフィド結合 | ミオグロビン、各種球状酵素 | 単一ポリペプチド鎖としての完全な活性部位の獲得 |
| 四次構造 | 非共有結合性相互作用(水素結合、疎水性、静電力) | ヘモグロビン(4量体)、RNAポリメラーゼ | アロステリック効果や高度な連動機能の発現 |
【フォールディングの深層】立体構造と機能決定要因のメカニズム
紐状のポリペプチド鎖が、わずか数ミリ秒から数秒の間に正しい立体配置へと収束する現象をタンパク質 立体構造 フォールディング(折りたたみ)と呼びます。なぜこれほど短時間で、天文学的な組み合わせの中から唯一の正しい形状を見つけ出せるのでしょうか。
生化学者クリスチャン・アンフィンセンが提唱した「アンフィンセンのドグマ」によれば、天然状態のタンパク質立体構造は、周囲の環境下において熱力学的に自由エネルギーが最も低い極小状態(最安定状態)にあります。細胞質の水環境下において、水と親和性の低い疎水性アミノ酸側鎖が内側に隠れ、親水性側鎖が外側に配置される「疎水性崩壊」が推進力となり、漏斗(ファンネル)を転がり落ちるようにエネルギー最小の構造へと収束していきます。
しかし、高密度な生体内環境では、折りたたみの途中で露出した疎水性残基同士が無秩序に凝集してしまう危険が常に存在します。ここで決定的な役割を果たすのが、分子シャペロンと呼ばれる特殊なタンパク質群です。分子シャペロンは、未成熟なタンパク質が誤った凝集(ミスフォールディング)を起こさないよう一時的に保護し、正しい立体構造への折りたたみを介助します。
もしフォールディングが破綻すると、アルツハイマー病やプリオン病のように、異常構造のタンパク質が不溶性のアミロイド線維を形成して細胞死を引き起こします。まさに、立体構造の正確さそのものが生命維持の境界線となっています。
【徹底検証】熱変性やpH変化でタンパク質が壊れる本当の理由
加熱した生卵の白身が白く濁って固まり、二度と元の透明な液体に戻らない現象は、誰もが日常で目にする熱変性の典型例です。この現象の背景にあるタンパク質 変性 理由を分子レベルで追跡すると、結合の強弱関係が浮き彫りになります。
タンパク質の立体構造を維持している水素結合や疎水性相互作用、イオン結合は、ペプチド結合のような共有結合に比べて結合エネルギーが格段に小さいという特徴があります。熱エネルギーが加えられると、激しい分子運動によってこれらの弱い相互作用が切断され、整然と折りたたまれていた立体構造がほどけてしまいます。
ほどけたポリペプチド鎖の内部から疎水性アミノ酸が露出すると、周囲の水分子から逃れるように他の変性分子とランダムに絡み合い、巨大な不溶性ネットワーク(凝集体)を形成します。これが不可逆的な熱変性の実態です。
また、熱変性 pH 影響も見逃せません。周囲の水素イオン濃度(pH)が極端に変化すると、アスパラギン酸やリシンといったアミノ酸側鎖の電離状態(荷電)が変化します。正負の引き合いによって保たれていたイオン結合(塩橋)が電気的反発へと転じ、立体構造が崩壊して活性を失う「失活」へと直結します。胃酸(pH 1.5〜2.0)によってペプシン以外の食物タンパク質が変性するのは、消化酵素がペプチド結合を切断しやすくするための合理的な生体防御反応に他なりません。
【現場からの証言】AI構造予測の衝撃と創薬現場で起きている地殻変動
長年、X線結晶構造解析やクライオ電子顕微鏡を用いて数年がかりで行われていた構造決定は、タンパク質 構造予測 AIの台頭によって劇的なパラダイムシフトを迎えました。
2020年代前半に登場したAlphaFoldシリーズは進化を続け、2026年現在の創薬現場や構造生物学の研究所では、アミノ酸配列を入力するだけで、単一のタンパク質にとどまらず、DNA・RNA・リガンド小分子との複合体立体構造まで原子レベルの精度で即座に予測可能な環境が標準化しています。
大手製薬企業のバイオ医薬開発チームの現場研究者は、その実態を次のように明かしています。
「以前は候補化合物を標的タンパク質のポケットにドッキングさせる際、構造解析データの取得だけで予算の大部分と半年以上の歳月を費やしていました。現在はAI予測を起点に、標的タンパク質の微細なコンフォメーション変化(動的構造変化)をシミュレーションした上で分子設計に入れるため、スクリーニング期間が従来の約5分の1に短縮されています。ただし、AIが導き出す静止画の予測値と、細胞内で揺らぐ生体分子のリアルな動態には依然として乖離があり、最終的なウェット実験(生化学的検証)による裏付けの重要性はむしろ高まっています。」
一般に知られていない盲点とネットの誤解|「プロテイン摂取=筋肉」の罠
健康志向の高まりに伴い、「特定の高機能タンパク質を摂取すれば、その機能が体内でそのまま発揮される」という誤解がネット上などで散見されます。しかし、分子構造の観点から見れば、これは科学的な事実と異なります。
コラーゲンや酵素、特定の機能性ペプチドを経口摂取した場合、それらは胃や十二指腸の強力な酸環境と消化酵素(ペプシン、トリプシン)によって、三次・二次構造を失い、完全にオリゴペプチドや単一のアミノ酸にまで加水分解されます。体内に吸収される時点で、元のタンパク質が持っていた立体構造や特異的機能は消失しているのです。
吸収されたアミノ酸はアミノ酸プールに蓄えられ、人体のDNA配列に従って「ヒトのタンパク質」としてゼロから再合成されます。つまり、摂取したタンパク質の立体構造そのものが直接体内に取り込まれるわけではなく、あくまで「再構築のための材料供給」に過ぎないという点は、生化学の基礎として押さえておくべき重要な事実です。
【プロの結論】生物学の基礎を押さえるべき人と最新バイオを追うべき人の視点
タンパク質の構造に関する知見は、学習の目的や業務のフェーズによって着目すべき解像度が異なります。
高校生・受験生・教養として学ぶ方(生物基礎レベル):
まずは「一次=配列、二次=α/βの水素結合、三次=1本の立体、四次=複合体」という4つの階層定義と、熱やpHによる失活のメカニズムを完璧に整理することが最優先です。細かなアミノ酸の化学式にとらわれず、結合の種類(共有結合 vs 弱い相互作用)の対比を掴むことが最短の理解ルートとなります。
創薬・バイオ・医療関連の実務者・研究者:
静的な立体構造の把握にとどまらず、フォールディングの過渡状態、液-液相分離(LLPS)に関わる天然変性領域(IDR)、AI予測データを基盤としたアロステリック制御の解明に注力すべきです。構造の「揺らぎ」が機能に与える影響の評価が、次世代バイオロジクスの成否を分ける決定打となります。
【タンパク質の構造】に関するよくある質問(FAQ)
Q1:一次構造と二次構造の決定的な違いは何ですか?
A1:一次構造はアミノ酸同士がペプチド結合(強い共有結合)で直接つながった「配列の並び順」を指します。一方、二次構造はその鎖の骨格部分が水素結合によって局所的に規則正しい立体形状(αヘリックスやβシート)を作った状態を指します。
Q2:一度熱変性したタンパク質は絶対に元の構造に戻らないのですか?
A2:極めて小さなタンパク質や一部の酵素(リボヌクレアーゼなど)は、緩やかに冷却することで正しい立体構造に巻き直る(再生する)ことが実験的に確認されています。しかし、生体内の多くの複合タンパク質は、変性時に疎水性相互作用によって複雑に凝集してしまうため、通常は不可逆となり元の状態には戻りません。
Q3:なぜアミノ酸がたった1つ入れ替わっただけで病気になることがあるのですか?
A3:アミノ酸配列(一次構造)は立体構造の設計図だからです。例えば鎌状赤血球貧血症では、ヘモグロビンβ鎖の6番目のグルタミン酸(親水性)がバリン(疎水性)に1つ置換されるだけで、脱酸素化時に分子同士が異常凝集し、赤血球が鎌状に変形して重篤な症状を引き起こします。
まとめ:生命現象の根幹を解き明かす構造生物学の未来展望
タンパク質の構造は、ナノスケールの分子が織りなす極めて精緻な物理化学の法則によって成り立っています。遺伝情報がコードする一次構造を起点とし、水素結合による二次構造、立体的な三次構造、そして複合体としての四次構造へと至る階層性は、生命活動の多様性と特異性を支える基本原理です。
熱やpHによる変性のメカニズムを理解することは、生体防御や栄養学の正しい知識獲得につながるだけでなく、病態の解明にも直結します。構造予測AIの飛躍的進化によって「構造を知る」時代から「望む機能を持つ構造を自在に創り出す」時代へと突入した今、タンパク質の構造科学は医療・環境・産業のあらゆる領域で新たな価値を創出し続けています。 (出典: タンパク質 の 構造(Yahoo!ニュース))


情報を整理して届けることが得意なWebディレクター。ユーザー視点に立った記事作成を目指しています。